39位专家联合撰写18万词,一文读懂表观遗传学如何贯穿发育、衰老、肿瘤与治疗
蜜蜂群里,蜂后和工蜂的基因几乎完全相同。幼虫期食物的不同,让一只发育成寿命数年、每天产卵上千的蜂后,另一只成了寿命只有几周的工蜂。2008年发表于《Science》的研究表明,拉开这场命运分岔的关键因素之一,是DNA甲基化水平的差异。
人类也有类似现象。同卵双胞胎携带几乎一致的基因组,但随年龄增长,两人基因组的甲基化模式差异越来越大,生活方式不同的双胞胎,衰老速度和患病风险可以相差明显。肿瘤组织中,率先耐药的那群细胞,基因序列往往与敏感细胞没有本质差别,变的是基因的使用方式。
这些现象指向同一个事实:决定细胞是谁的,除了DNA序列,还有一层不写入序列、却随时调控基因开与关的系统,即表观遗传(epigenetics)。
(https://doi.org/10.1007/s11427-025-3356-1)
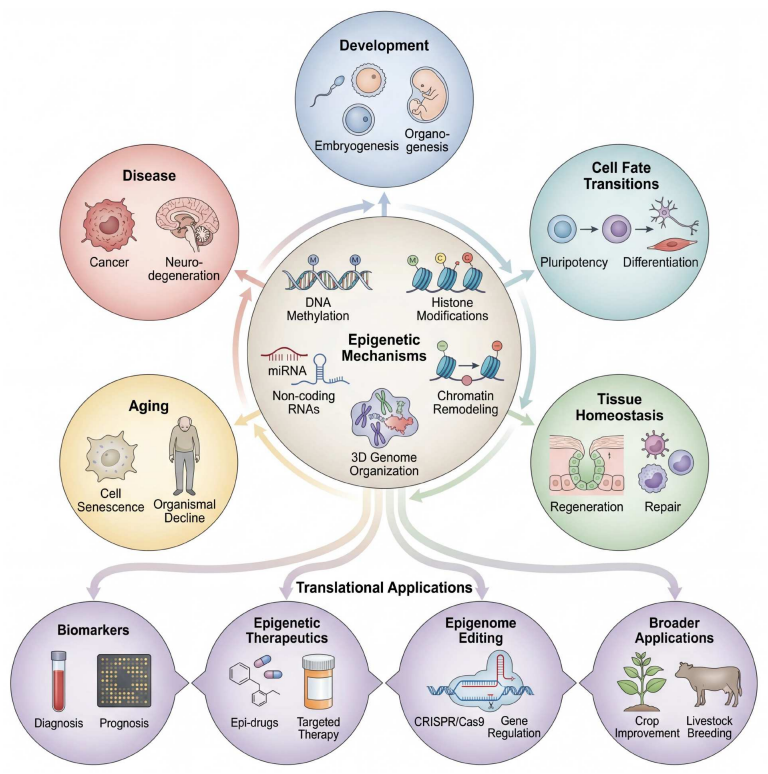
近日,SCIENCE CHINA Life Sciences(《中国科学:生命科学》英文版)在线发表综述“Epigenetics in development, disease, and therapy: from mechanisms to clinical interventions”。由高绍荣院士牵头,朱冰院士、颉伟教授、孟卓贤教授、李国红教授等39位专家联合撰写。全文153页、近18词。文章涵盖七个章节,系统整理了表观遗传学的主要调控机制,以及这些机制在生殖发育、细胞重编程、组织稳态、衰老和肿瘤中的作用,并讨论生物标志物、表观药物和靶向表观编辑的转化方向。
并围绕三个相互联系的问题展开:细胞身份如何建立与维持;调控失衡如何参与疾病;哪些表观变化能够用于检测和干预。DNA甲基化、组蛋白修饰、染色质重塑、三维基因组及RNA调控共同影响遗传信息的使用方式,将这些问题连接起来。
下面小编将对这七个章节进行提炼总结,方便各位老师同学快速阅览文章内容,这篇大综述可谓是表观遗传学的百科全书,想看完整版的老师同学可以找原文进行详细阅读。我们接着往下看👇
一、机制总览:
同一套基因,如何运行出不同的程序
本章重点:表观遗传调控通过DNA修饰、染色质结构及RNA相关机制,影响基因表达和细胞功能。其中,作用位置、细胞类型和发育阶段决定了许多调控效应。
1. 概念与研究范围
多数体细胞具有基本相同的基因组,却执行不同的功能。表观遗传学研究有助于解释这些差异如何在DNA序列不发生相应改变的条件下形成,并在细胞分裂或状态转换过程中维持。
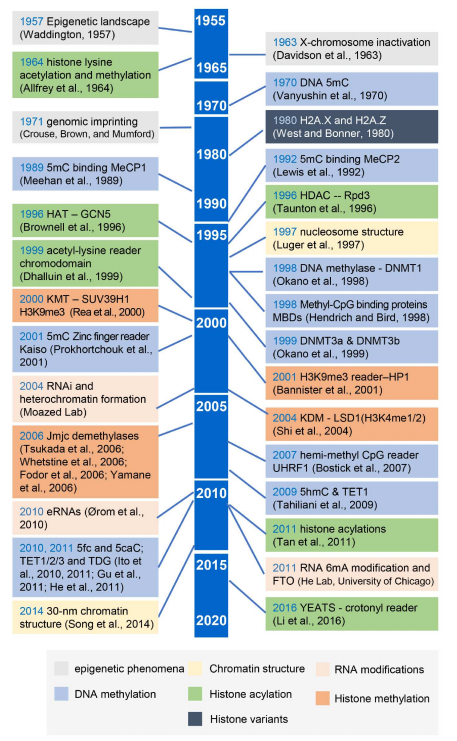
文章回顾了从表观遗传景观、X染色体失活、DNA甲基化,到组蛋白调控、RNA修饰与三维基因组的研究发展。理解这一领域时,需要区分两种“遗传”:
细胞分裂中的状态传递:部分甲基化和染色质状态可以在子代细胞中维持,构成细胞记忆的基础。
- 亲代与子代个体之间的跨代传递:需要证明相关信息能够跨越生殖细胞和胚胎重编程过程,其证据要求更高。
文章将RNA修饰等与细胞状态密切相关的调控机制一并讨论,但不将所有短暂的基因表达变化都视为稳定遗传现象。
2. DNA甲基化与去甲基化
哺乳动物中研究最充分的DNA修饰是5-甲基胞嘧啶(5mC)。其分布由甲基化的建立、维持和去除共同决定,参与基因组印记、重复序列抑制和细胞类型特异性表达。
- DNMT3A、DNMT3B主要参与从头甲基化,帮助建立新的甲基化分布。
- DNMT1主要参与复制后的甲基化维持,使部分调控状态在细胞分裂后延续。
- TET家族可将5mC逐步氧化为5hmC、5fC和5caC,参与DNA去甲基化及相关调控。
甲基化的意义需要结合位置判断。启动子CpG岛甲基化经常与转录抑制相关;基因体、增强子和重复序列上的甲基化则承担不同功能。5hmC既与去甲基化过程有关,也具有特定的组织分布和调控意义,不能简单当作5mC的等价读数。
3. 组蛋白修饰、组蛋白变体与染色质重塑
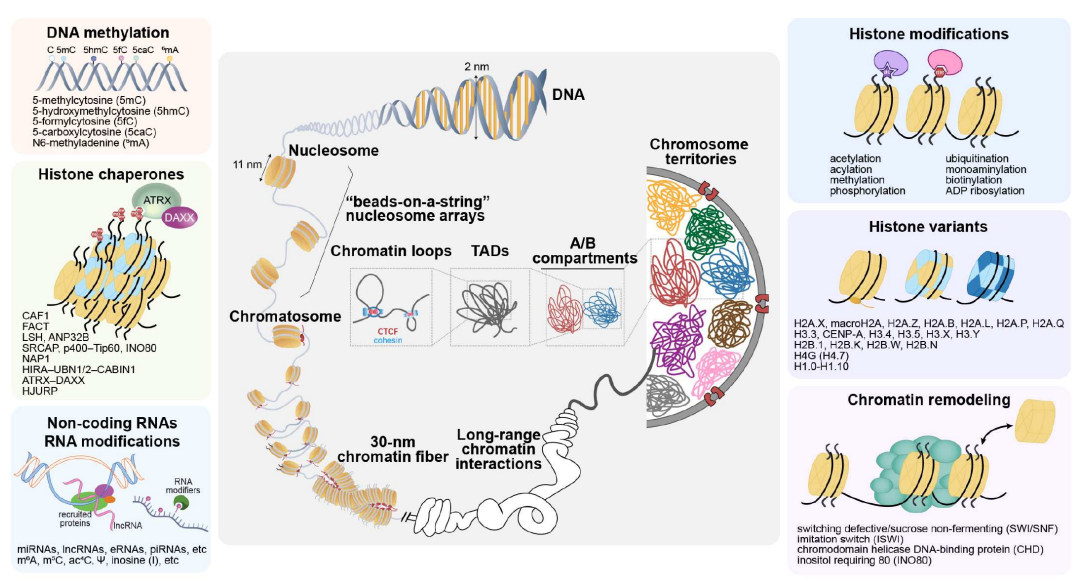
DNA缠绕组蛋白形成核小体。核小体组成、组蛋白修饰和排列方式,会影响DNA可及性、调控因子募集及转录活动。综述将三类相关机制分别讨论:
- 组蛋白修饰:乙酰化、甲基化、泛素化及其他修饰改变局部染色质环境,并提供蛋白识别位点。
- 组蛋白变体:H2A.Z、H3.3、macroH2A等替代常规组蛋白,参与转录、DNA修复和细胞状态维持。
- 染色质重塑:SWI/SNF、ISWI、CHD、INO80等复合物利用ATP改变核小体位置或组成,调节DNA的可接近程度。
常见标记中,H3K4me3多与活跃启动子相关,H3K27ac常用于识别活跃增强子及启动子;H3K27me3和H3K9me3通常与不同类型的转录抑制环境相关。组蛋白甲基化的作用取决于具体位点和甲基化程度,不能统一解释为抑制。
修饰的写入、识别和去除共同决定调控结果。一个标记能够招募哪些蛋白,附近是否存在相应转录因子,往往比单独观察标记升降更接近机制本身。
4. 三维基因组与RNA调控
染色质在细胞核中形成染色体领地、A/B区室、拓扑关联结构域(TAD)和局部相互作用。远距离增强子与启动子能够在空间中接近,其联系受到染色质状态和结构蛋白等因素影响。三维组织因此为理解基因表达提供了空间维度。
RNA相关机制进一步扩展了调控范围:非编码RNA可参与染色质调节、转录和转录后控制;RNA修饰与RNA结合蛋白则影响剪接、稳定性、输出和翻译。不同层次之间存在相互作用,例如组蛋白修饰能够影响DNA甲基化酶的定位,RNA也能参与调控复合物的组织和募集。
本章的核心认识是:细胞状态由多种调控机制共同形成。 测到某个标记与表达变化相伴,首先支持两者相关;确认其驱动作用,还需要位点扰动、时间序列或功能实验。
二、哺乳动物发育与生殖:
表观状态的重置与谱系建立
本章重点:配子形成、受精后重编程和早期谱系分化,要求表观信息在特定阶段被清除、保留或重新建立。DNA与染色质变化、RNA代谢共同参与这一过程。
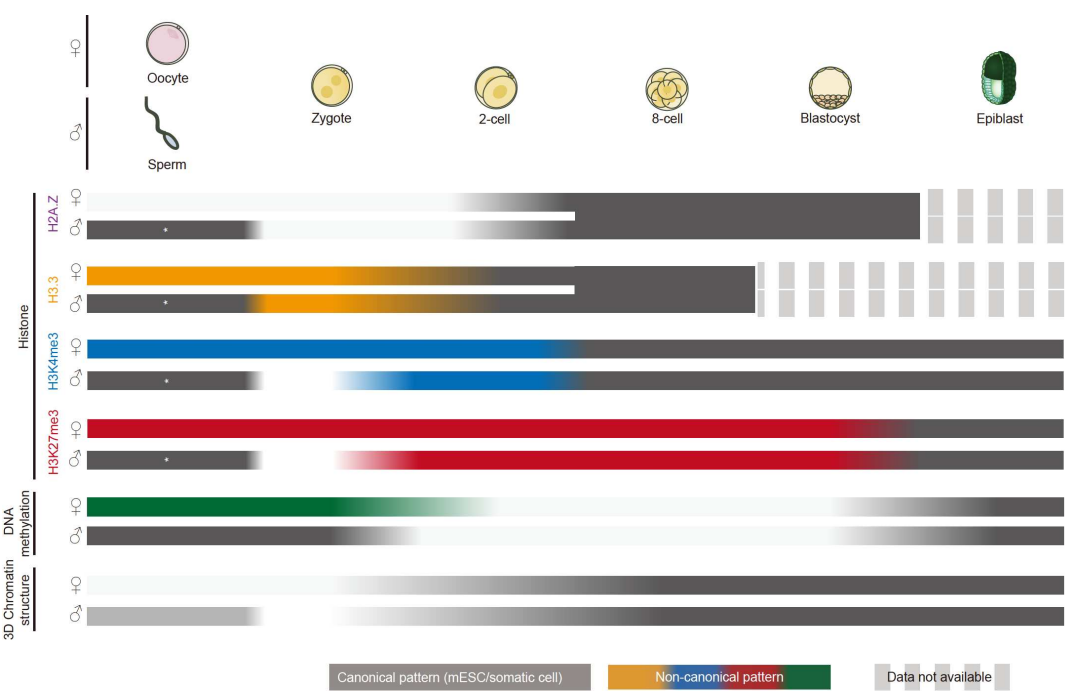
1. 精子与卵细胞具有不同的表观特征
精子和卵细胞的DNA甲基化、染色质包装及组蛋白修饰存在差异。这些特征与配子形成、亲本来源信息以及受精后的发育能力有关。
- 精子具有高度压缩的染色质,部分区域保留组蛋白及相关修饰,同时携带小RNA等分子信息。
- 卵细胞形成与卵母细胞生长、转录活动相关的甲基化和染色质分布,并储存支持早期发育的母源RNA与蛋白。
- 基因组印记使部分基因呈现亲本来源相关的表达差异,是配子表观信息中的重要组成部分。
文章以小鼠为例,汇总了从成熟配子、合子、卵裂胚到囊胚及上胚层的表观变化。图中同时标明部分精子染色质证据存在争议、某些阶段仍缺少数据。该图应作为小鼠发育框架解读,不宜直接套用人类胚胎的时间节点。
2. 受精后重编程与合子基因组激活
受精后,亲本基因组经历广泛的甲基化变化、组蛋白重组和染色质结构调整,逐步建立支持胚胎发育的调控状态。主要包括:
- DNA甲基化重置:亲本来源的甲基化总体下降,但动力学和保留区域并不完全一致。
- 组蛋白与核小体重组:配子中的部分分布被改变,形成适合早期胚胎转录的染色质环境。
- 三维结构重建:配子中的部分高级结构在受精后减弱,随后随发育逐步建立。
- 转录程序转换:胚胎从较多依赖母源产物,转向激活自身基因组,即合子基因组激活(ZGA)。
ZGA由转录因子网络、核小体定位及多种染色质机制协同调节。不同物种在激活时期和关键调控因子上存在差异;个别因子能够诱导部分早期基因表达,不代表其独立负责整个过程。
3. 早期谱系分化与多能性的建立
胚胎进入囊胚阶段后,滋养外胚层(TE)与内细胞团(ICM)逐渐形成不同的表达和表观状态。细胞极性、Hippo/YAP等信号与谱系转录因子共同参与最初的分化,随后通过染色质调控维持差异。
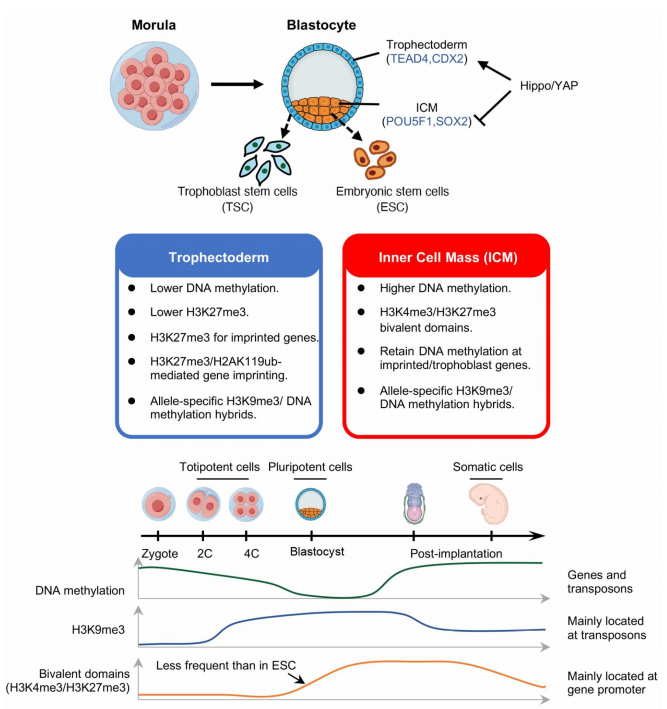
- 谱系特异性表达逐步建立,不同细胞获得不同的发育方向。
- 抑制性修饰重新分布,帮助限制不适合当前谱系的转录程序。
- H3K4me3/H3K27me3双价结构域参与部分发育基因的调控,使细胞保留对后续分化信号作出反应的能力。
- 印记信息受到选择性保护或调节,支持正常胚胎与胚外组织发育。
发育中的“重置”具有选择性。例如H19/IGF2等印记区域涉及亲本来源相关的调控差异;这些信息的正常维持,与大范围甲基化清除同样重要。
4. 转座元件与RNA调控
早期发育过程中,转座元件的表达受到严格调节。部分元件既涉及基因组稳定性,也可提供启动子、增强子或其他调控序列,参与阶段特异性的转录网络。RNA机制则参与转座元件控制、母源产物清除和新程序建立。
- piRNA与PIWI蛋白协作,参与生殖细胞中转座元件的抑制。
- miRNA、siRNA及相关通路参与RNA表达与降解调控,其作用需结合物种和发育阶段理解。
- m6A、m5C等RNA修饰通过不同识别蛋白调节母源转录本稳定性、清除及其他RNA过程。
- lncRNA与RNA结合蛋白参与基因组印记、X染色体失活、谱系分化和RNA颗粒组织。
这一部分说明:早期发育既涉及新基因的启动,也涉及已有RNA的有序处理。仅检测转录本总量,往往不足以区分转录增强与RNA稳定性改变。
5. 生殖医学与环境影响
配子表观异常与部分不育、胚胎发育障碍存在联系。年龄、代谢和环境暴露也可能影响相关状态;辅助生殖条件对表观重编程的影响,是综述讨论的研究方向之一。
主要研究任务包括:识别与发育能力相关的表观特征;区分原因与伴随变化;验证模型发现能否适用于人类。单细胞、低起始量和多组学技术,为配子与早期胚胎等有限样本提供了新的研究条件。
三、干细胞与体细胞重编程:
发育潜能如何维持和转换
本章重点:全能性、多能性与分化状态具有不同的表观特征。染色质、RNA和核内分子组织共同参与状态转换;体细胞重编程与核移植则揭示了这些状态的可塑性及其限制。
1. 全能性与多能性的表观基础
全能性通常指产生胚体及支持完整发育所需胚外组织的潜能;多能性主要指形成各类胚体细胞的潜能。研究中出现早期胚胎样表达特征的细胞,还需要结合功能标准判定其发育能力。
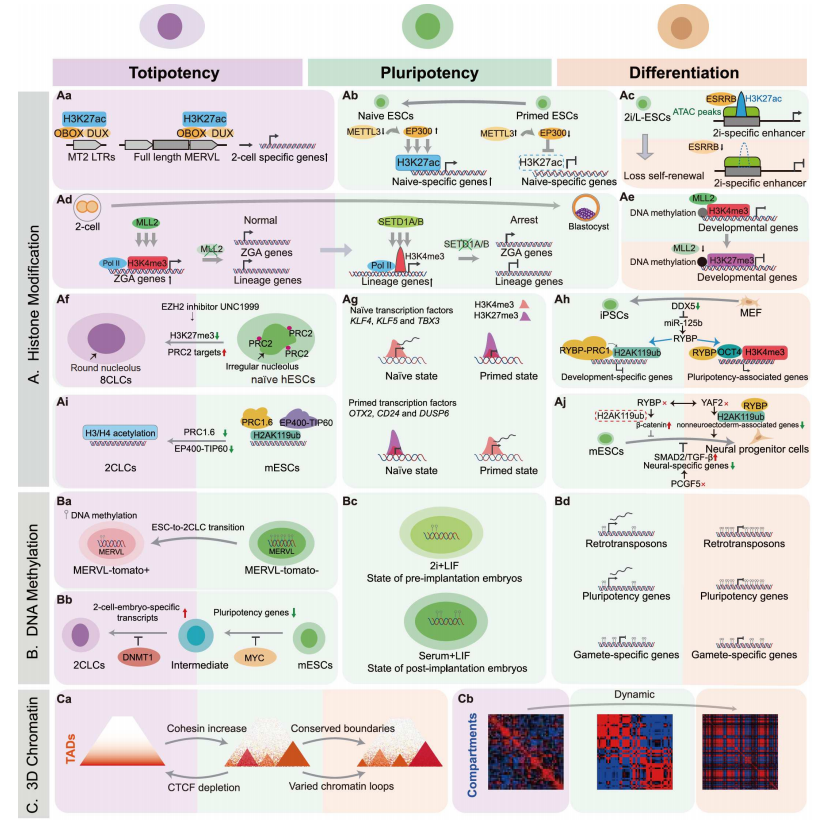
文章从三个层面比较不同潜能状态。
- 组蛋白修饰:H3K27ac、H3K4me3、H3K27me3及H2AK119ub等参与多能性维持、早期胚胎样状态和分化相关基因调节。
- DNA甲基化:不同培养条件和细胞状态具有不同的甲基化分布,影响谱系程序及转座元件表达。
- 三维基因组:TAD、区室和局部互作随发育与分化改变,并与转录网络重组相联系。
某一种修饰的升降不能单独定义细胞潜能。判断状态转换,需要结合基因表达、染色质图谱和分化功能,尤其应避免仅依据少数标志基因作出结论。
2. 相分离与核内调控组织
文章讨论了相分离相关凝聚体在早期胚胎、干细胞分化和体细胞重编程中的作用。其共同特征是特定蛋白与RNA在局部富集,从而影响分子接触与调控反应。
- 转录调控:转录因子和共调控因子的局部聚集,与增强子活动、多能性程序及重编程有关。
- 染色质修饰:相关酶与底物的空间组织,能够影响修饰分布和区域特异性。
- 三维结构:凝聚体与染色质组织、增强子—启动子联系存在关联。
例如,上图汇总了OCT4相关凝聚体与重编程、JMJD2相关凝聚体与增强子联系重组等研究。观察到分子聚集后,还需确认其形成机制及功能作用,不能仅依据显微镜下的斑点作出相分离判断。
3. RNA调控参与干细胞命运决定
RNA影响细胞潜能的方式包括表达调节、加工变化和蛋白异构体生成。
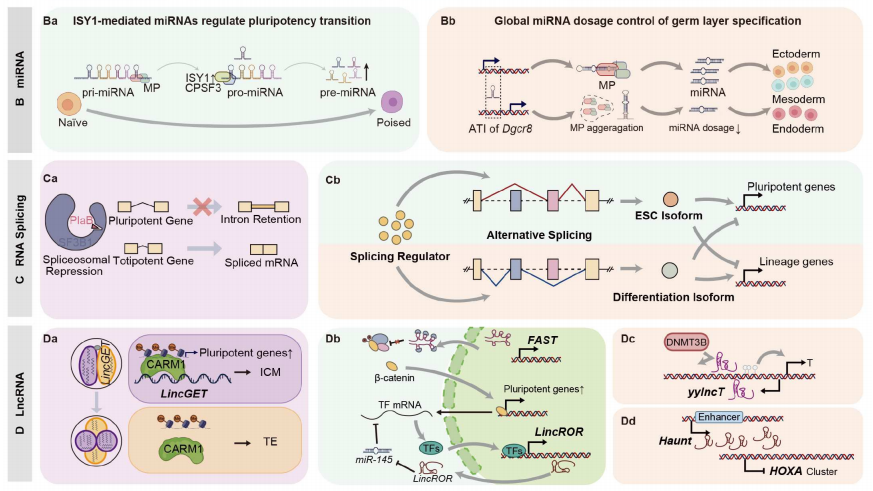
- miRNA通过调控靶转录本,参与多能状态转换和胚层分化。
- 可变剪接改变转录因子或染色质调控蛋白的异构体组成,使相同基因产生不同功能输出。
- lncRNA参与多能性相关基因、谱系基因以及局部染色质互作的调控。
这部分为研究提供了一个补充视角:当基因总表达量变化有限时,转录本结构、稳定性或翻译仍可能发生改变。需要根据具体问题选择转录组、剪接、RNA修饰或翻译层面的检测。
4. iPSC重编程:调控网络与表观记忆的重建
体细胞重编程为诱导多能干细胞(iPSC),涉及原有谱系程序的抑制和多能性网络的建立。主要变化包括:
- 抑制性染色质调整:H3K9me3等状态限制部分区域被重编程因子接近。
- 调控元件重新配置:体细胞相关增强子活动下降,多能性相关增强子逐步建立。
- DNA甲基化与三维结构改变:共同支持基因表达程序转换。
- 残留表观记忆:来源细胞特征可能影响重编程质量和后续分化倾向。
重编程效率与重编程质量是两个不同指标。 除获得细胞数量外,还需评价状态一致性、分化能力与遗传稳定性。单细胞分析能够帮助识别不同中间状态及未充分重编程的细胞。
5. 体细胞核移植与表观遗传障碍
体细胞核移植(SCNT)要求卵细胞环境重新组织供体核的调控状态。原文将核移植胚胎在不同发育阶段面临的障碍作了汇总。
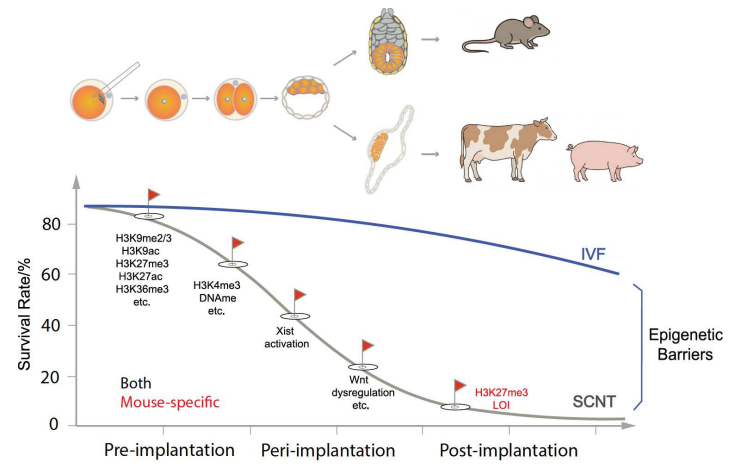
- H3K9me3等抑制性修饰残留可限制胚胎基因激活。
- DNA甲基化重置不充分影响供体核向胚胎状态转换。
- 异常Xist表达及印记调控在部分模型中造成发育障碍。
- 不同阶段存在不同限制因素,改善早期发育指标,并不必然同步改善后续发育。
核移植研究说明,成熟细胞核仍保留较广的遗传潜能,但恢复发育能力需要多层调控协调。图中也区分了部分模型特异性结果,应用时应保留物种与实验体系背景。
四、组织稳态:
维持细胞身份、组织功能与再生能力
本章重点:成年组织通过表观调控维持功能,同时保留对代谢、损伤和炎症作出反应的能力。原文分别讨论胰岛β细胞、肌肉干细胞和造血干细胞。
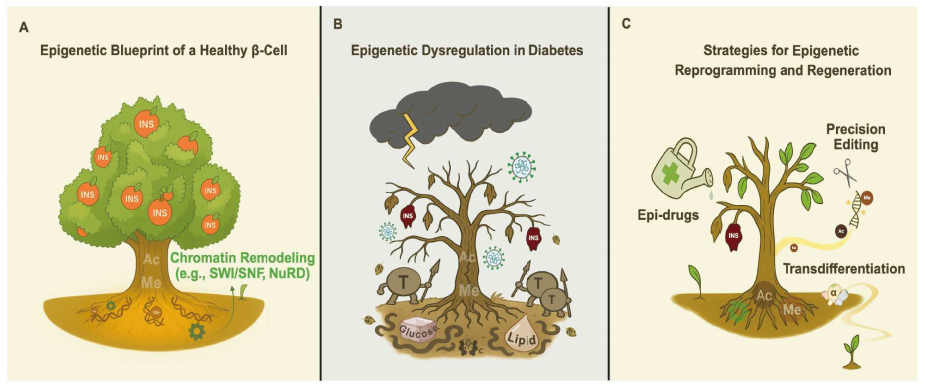
1. 胰岛β细胞:身份维持与葡萄糖响应
β细胞需要将葡萄糖变化转化为适当的胰岛素分泌。表观调控既支持β细胞相关基因表达,也抑制不适合该细胞功能的程序(上图A)。
- 谱系身份维持:DNA甲基化、组蛋白修饰和染色质重塑共同参与PDX1等β细胞身份相关网络的调控。
- 其他谱系程序抑制:DNMT3A、DNMT1参与Arx等相关位点的甲基化建立或维持,帮助限制不适当的谱系转换。
- 代谢功能成熟:部分代谢基因受到选择性抑制,使葡萄糖感知与胰岛素分泌保持正常联系。
糖尿病相关的炎症、代谢压力和免疫环境,可伴随β细胞表观状态异常、身份相关基因降低及功能受损。研究中需同时区分β细胞数量减少和存活β细胞功能下降,两者指向不同的干预问题。(上图B)
文章提出三类再生研究方向:通过表观调节改善已有β细胞功能;探索其他细胞向β样细胞转换;利用位点特异性编辑调节身份相关基因。这些方向的成熟程度不同,图中对精准编辑的描述属于研究与转化前景。(上图C)
2. 肌肉干细胞:静息、激活与自我更新的平衡
肌肉干细胞又称卫星细胞。在稳态下保持静息,组织损伤后进入激活、增殖和分化过程,同时保留一部分细胞补充干细胞群体。原文重点讨论这些转换如何受到染色质和RNA机制控制。
- 静息维持:限制过早激活,保留长期修复能力。
- 激活与增殖:通过染色质开放和相关转录程序变化,响应损伤信号。
- 分化与自我更新:协调肌源性基因表达及谱系程序,兼顾组织修复与干细胞储备。
- 衰老与疾病影响:异常的染色质状态及微环境信号,可改变细胞反应和再生能力。
原文同时讨论组蛋白修饰酶、染色质重塑复合物及非编码RNA的作用,并将其与肌肉疾病中的调控失衡联系起来。肌肉修复的评价需要同时考虑新生肌纤维形成和干细胞储备的维持。单纯提高短期增殖,并不能完整代表再生功能改善。
3. 造血干细胞:自我更新与谱系分化
造血干细胞(HSC)持续补充血细胞,同时维持自身群体。表观调控参与干性维持、分化方向选择和应激反应。
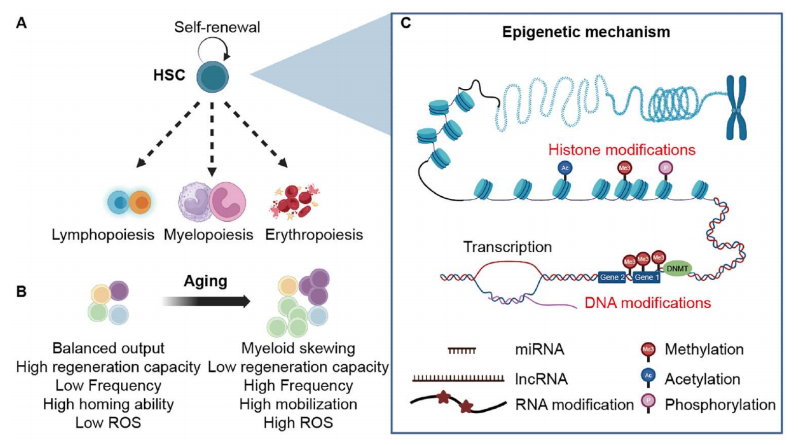
- DNA甲基化调控:DNMT3A与TET2等影响干细胞特征和分化程序,相关异常与克隆扩增及血液疾病有关。
- 组蛋白修饰与染色质结构:调节干性相关基因、谱系特异性基因及调控元件之间的联系。
- RNA修饰与RNA结合蛋白:通过转录本稳定性和翻译等过程,参与自我更新和分化转换。
- 年龄相关变化:影响造血输出、谱系偏向及细胞对压力的反应。
分析造血系统时,需区分细胞内部的调控改变与不同克隆比例的变化。整份样本中的某个标记升高,可能来自特定细胞群体增多,也可能来自同类细胞中的修饰水平改变。细胞组成与细胞状态应分别评估。
4. 三类组织的共同研究问题
三个体系分别强调代谢功能、损伤修复和持续分化,但均涉及身份稳定性与可塑性的协调。文章提出的研究重点包括:哪些调控变化先于功能下降;哪些属于适应性反应;针对特定细胞和位点的调节,能否改善功能而不破坏原有组织平衡。
五、衰老及相关疾病:
表观组变化、年龄评估与干预
本章重点:衰老伴随DNA甲基化、组蛋白和染色质结构、RNA修饰及非编码RNA的变化。部分变化能够作为年龄相关标志,另一些参与功能下降;两类证据需要区分。
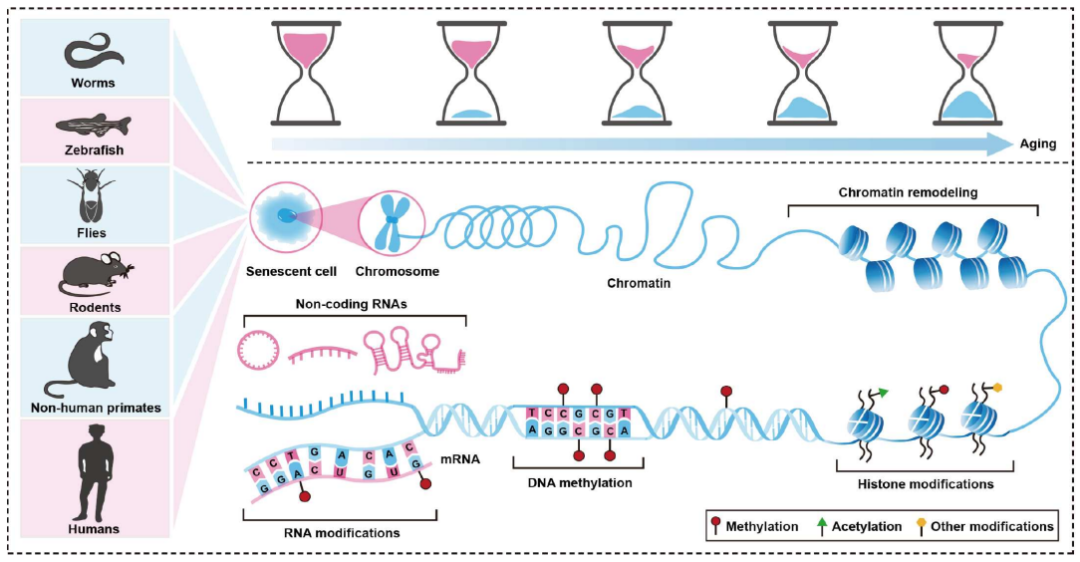
1. DNA甲基化变化与表观遗传时钟
文章将衰老相关甲基化变化概括为总体与局部模式的改变:许多研究观察到广泛低甲基化与特定位点高甲基化并存,但具体分布受组织、细胞类型和疾病状态影响。
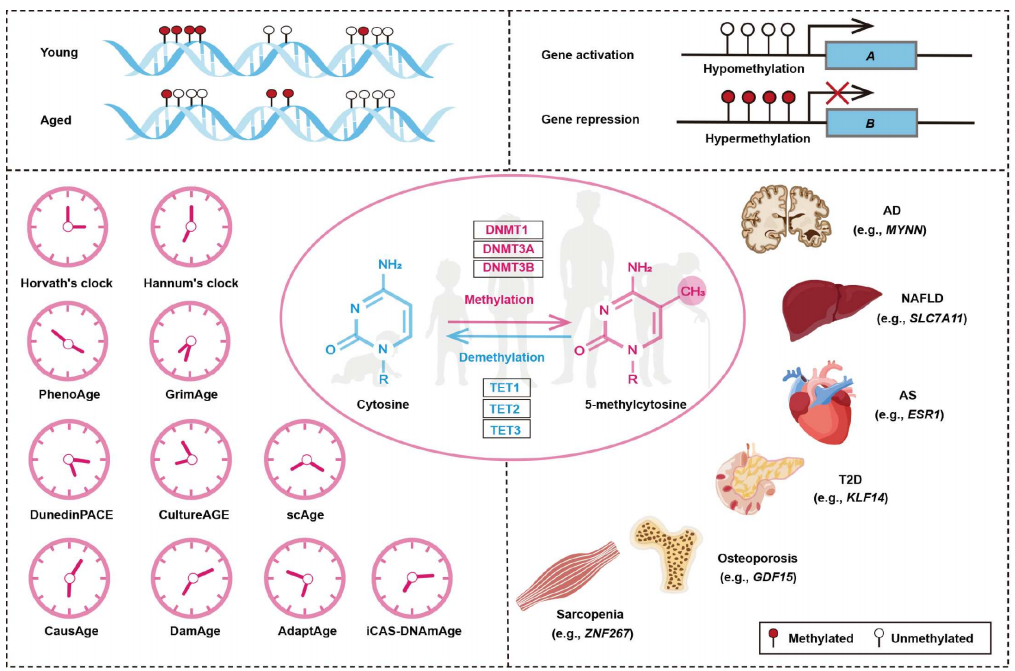
部分启动子或调控区域的甲基化改变,与基因表达及代谢、炎症等功能变化相关。
- 重复序列和其他基因组区域的变化,可能影响原本受到限制的转录程序。
- 样本细胞组成变化,也会影响群体甲基化测量结果,需要在分析中考虑。
表观遗传时钟利用一组甲基化位点与统计模型,估计实际年龄、健康相关年龄指标或衰老速度。原文汇总了Horvath时钟、PhenoAge、GrimAge、DunedinPACE及单细胞相关模型等。
这些模型的训练目标和适用范围不同。解读时应看清三个问题:模型预测什么;来自何种组织与人群;是否经过独立验证。时钟读数变化是分子指标变化,不能单独替代器官功能、疾病结局或寿命证据。
2. 组蛋白修饰与染色质结构改变
衰老细胞中的部分异染色质、核纤层相关区域和基因组空间分区发生改变。原本受到抑制的区域可能出现异常表达,影响基因组稳定性及细胞功能。
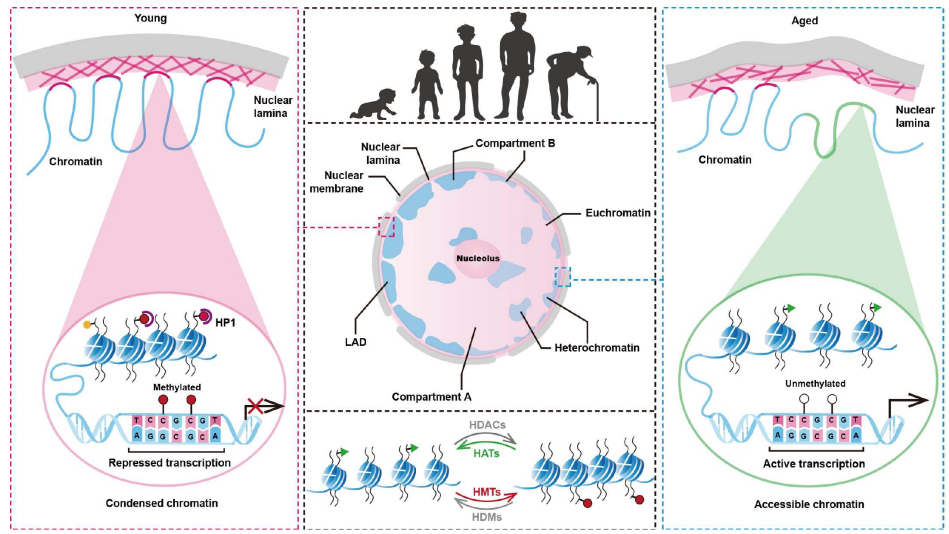
- 抑制性标记变化:H3K9me3等标记及其相关蛋白参与异染色质维持,其异常与细胞衰老存在联系。
- 核纤层关联改变:部分核纤层关联结构域(LAD)与核周结构的联系减弱,影响染色质组织。
- 活性区域重分布:乙酰化、染色质可及性和转录程序的变化,与衰老相关基因表达相联系。
这些改变与DNA损伤、炎症和代谢过程相互影响。研究时应进一步确定发生顺序,区分驱动衰老的变化与细胞对已有损伤作出的反应。
3. RNA修饰和非编码RNA
RNA层面的调控改变,能够在不改变DNA序列的情况下影响蛋白输出与细胞反应。
- m6A相关机制:写入酶、去除酶和识别蛋白共同影响RNA稳定性、剪接、输出及翻译,对衰老的作用具有细胞和靶转录本依赖性。
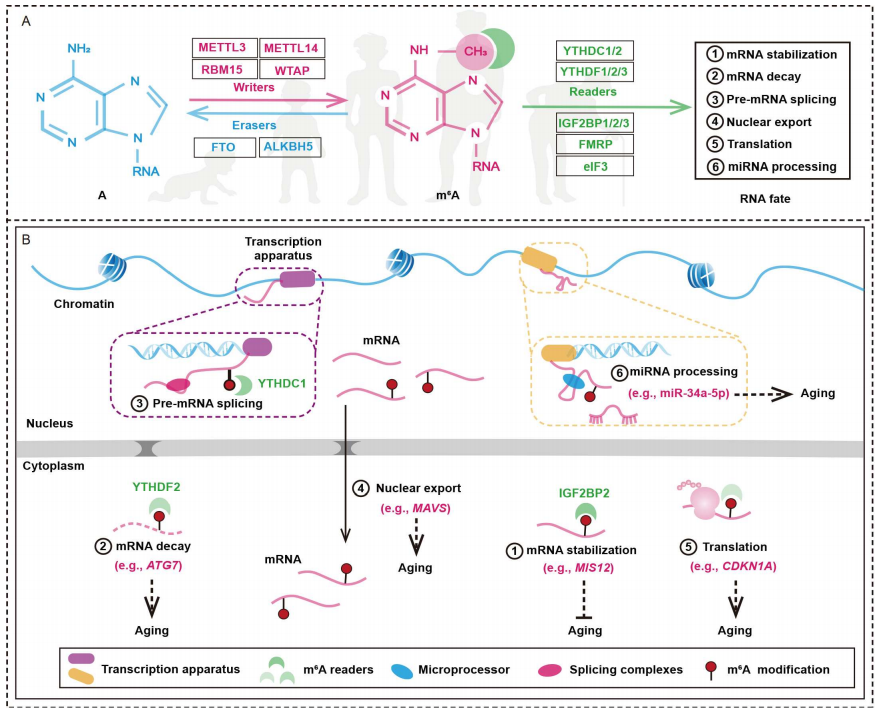
- miRNA:通过调节靶基因,参与炎症、细胞周期和组织功能变化。
- lncRNA、circRNA等:涉及染色质、RNA代谢及细胞应激调控,部分被研究为年龄相关疾病的候选标志物。
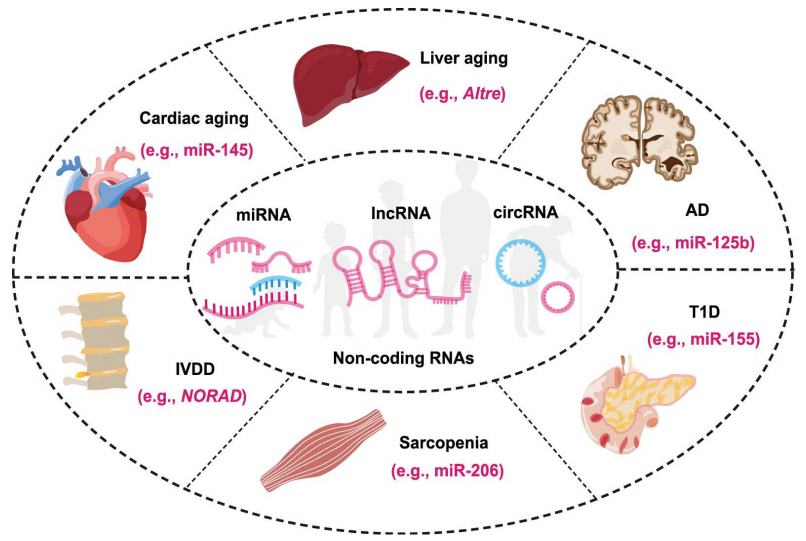
因此,分析RNA调控时需要同时关注修饰或调控因子、靶RNA及功能结果。某种修饰总体升高,并不能直接推断所有相关转录本的稳定性或翻译都会同向变化。
4. 衰老干预的研究方向
原文汇总的干预类型较多,包括小分子药物、基因相关干预、生活方式及其他策略。它们与表观机制的联系和证据阶段不同。
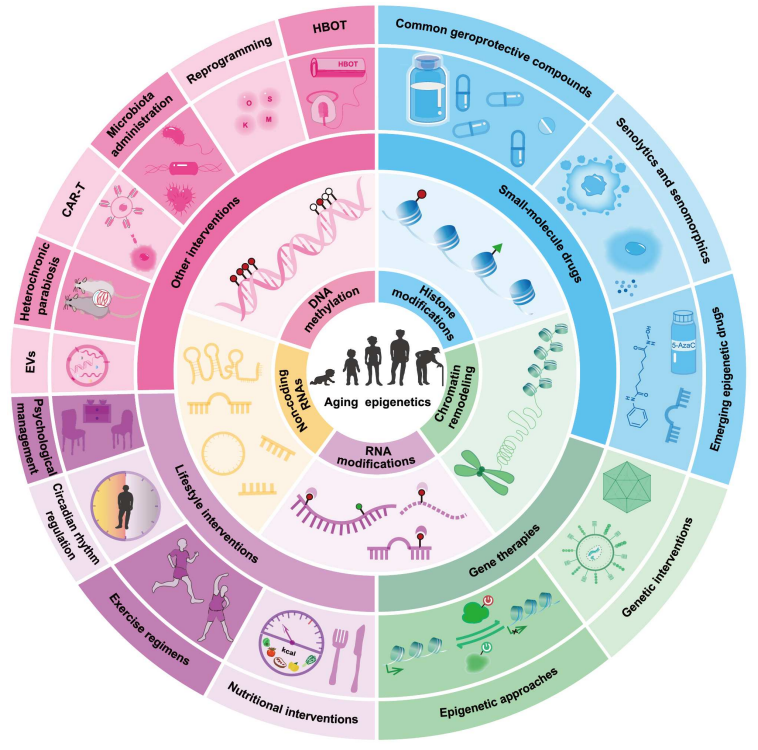
- 小分子研究:涉及衰老细胞清除、衰老表型调节及表观酶靶向等方向。
- 基因与重编程研究:探索特定调控因子、部分重编程或其他策略对年龄相关功能的影响。
- 营养、运动及节律相关研究:分析外部因素与表观状态、代谢和功能指标之间的关系。
- 其他探索:包括细胞外囊泡、免疫细胞、微生物群及其他模型研究。
该图呈现的是研究范围,不能理解为图中策略均已证实能够延缓人类衰老。不同策略应依据具体模型、终点和验证阶段分别评价。
5. 本领域仍需解决的问题
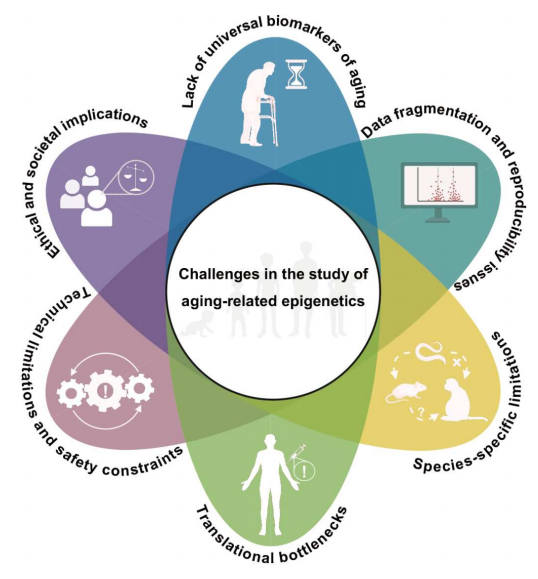
上图集中总结了衰老表观遗传学的主要限制:缺少统一适用的标志物;不同队列与平台间的数据一致性不足;物种差异影响外推;干预的持续性、递送和长期效应仍需研究。
对研究设计而言,优先任务是将细胞类型、组织位置、分子变化与功能终点联系起来。多时间点取样、单细胞与空间信息,有助于判断年龄相关变化发生于哪些细胞,以及这些变化如何影响组织。
六、肿瘤中的表观调控:
染色质、代谢与核酸修饰
本章重点:肿瘤中的表观异常涉及染色质重塑复合物、组蛋白修饰与变体,以及DNA和RNA调控。这些变化与细胞增殖、分化受阻、免疫反应和治疗反应相联系。
1. 染色质重塑异常与肿瘤特征
SWI/SNF、ISWI、CHD、INO80等重塑复合物参与核小体组织、转录调节和DNA损伤应答。相关亚基的突变、缺失或异常表达,可改变肿瘤细胞的调控程序。
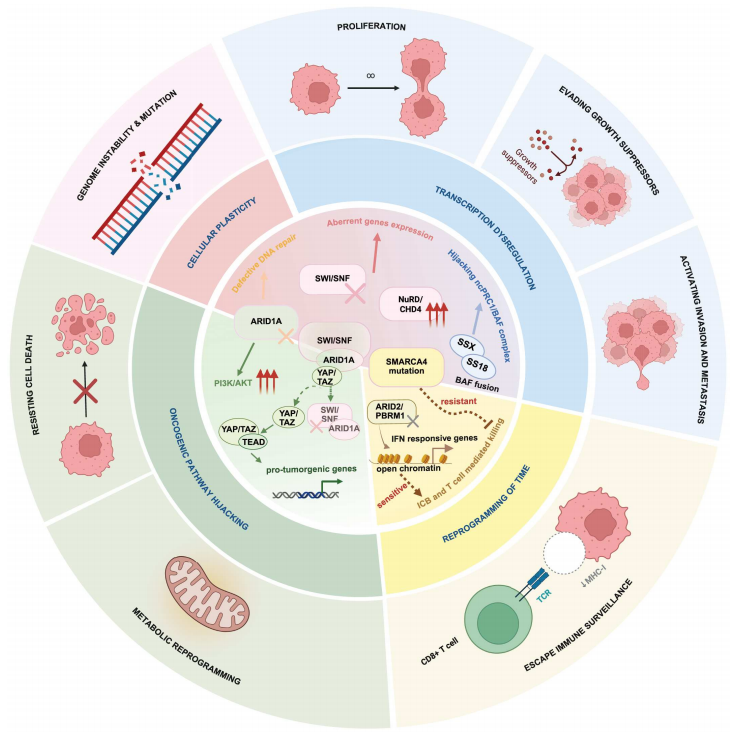
- 异常转录与谱系可塑性:原有分化程序受到扰动,细胞获得新的表达状态。
- 基因组稳定性改变:核小体组织和DNA修复异常,与损伤积累及突变相关。
- 信号与代谢变化:部分重塑因子异常影响生长信号和代谢程序。
- 免疫环境改变:抗原呈递、干扰素反应等过程受到影响,改变肿瘤与免疫细胞的相互作用。
上图汇总了ARID1A、SMARCA4等相关机制。不同重塑亚基、不同癌种中的异常后果并不一致。研究应明确具体遗传背景和细胞类型,再评价其是否形成可以利用的治疗依赖。
这一方向也涉及合成致死研究:某个调控组分缺失后,肿瘤可能更依赖另一组分。识别这种依赖,有望将分子异常转化为治疗线索,但仍需功能验证与疾病模型支持。
2. 组蛋白酰化:代谢变化与转录调控的联系
乙酰化、乳酰化、巴豆酰化、琥珀酰化等组蛋白修饰,将细胞代谢与染色质调控联系起来。不同修饰的底物来源、相关酶及功能并不相同,不能全部归结为同一条代谢途径。
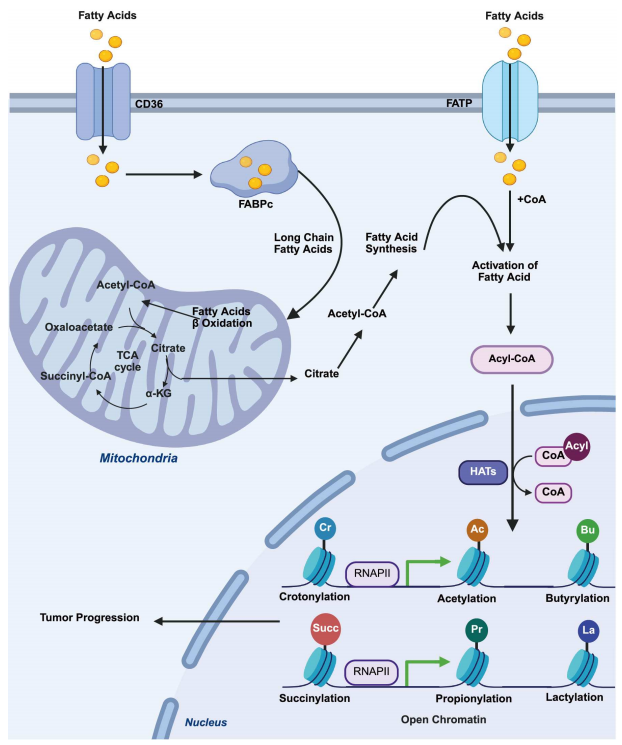
- 底物供应:代谢状态影响相关修饰所需分子的可用性。
- 酶活性与定位:修饰酶的表达、活性和募集,影响修饰发生的位置。
- 转录输出:启动子、增强子等区域的修饰变化,与增殖、分化、免疫及转移相关程序相联系。
这一部分的研究逻辑是:先确定哪种代谢变化对应哪类修饰,再定位受影响的基因区域,最后验证其功能。代谢物浓度变化与组蛋白修饰变化同时出现,并不意味着已经建立了完整因果关系。
3. 组蛋白甲基化及其他修饰的情境依赖性
组蛋白甲基转移酶和去甲基化酶异常,能够影响肿瘤细胞的分化、增殖及免疫相关表达。不同位点的功能需要分别讨论。
文章以H3K9me3展示其多重效应:它参与异染色质和基因组稳定性维持;减少该标记可解除部分基因或内源性逆转录病毒元件的抑制,在特定模型中引发核酸感知与抗肿瘤免疫反应。同时,异染色质丢失也可能带来基因组不稳定及其他不利结果。
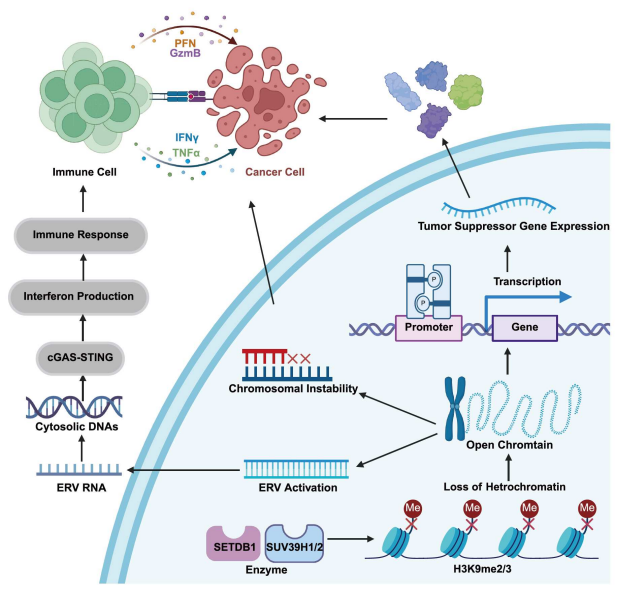
因此,同一标记既可能参与限制异常表达,也可能帮助肿瘤维持某种生存状态。将其作为靶点时,需要同时评价肿瘤细胞自身的变化和免疫环境的变化。
文章还整理了精氨酸甲基化、H2A/H2B泛素化和组蛋白瓜氨酸化等机制。这些修饰参与转录、DNA修复和炎症相关过程,进一步说明肿瘤染色质调控并不局限于常用的少数标记。
4. 组蛋白变体与致癌性组蛋白突变
组蛋白变体的表达、定位和突变能够影响染色质性质。原文讨论的代表包括:
- H3K27M:与部分弥漫性中线胶质瘤相关,可干扰PRC2及H3K27甲基化调控,影响分化程序。
- H3G34R/V、H3K36M:分别涉及不同肿瘤背景,通过影响H3K36相关修饰及其他过程,改变转录和染色质功能。
- H2A.Z、macroH2A等变体:在不同癌种中参与转录、细胞可塑性和肿瘤进展,其作用需结合具体背景。
组蛋白既是接受修饰的载体,其自身组成和序列变化也会影响调控。
5. DNA甲基化、TET与肿瘤代谢
肿瘤中常见的DNA甲基化异常,包括局部高甲基化与更广范围的低甲基化,分别与特定基因沉默、重复序列控制及基因组稳定性等过程相关。
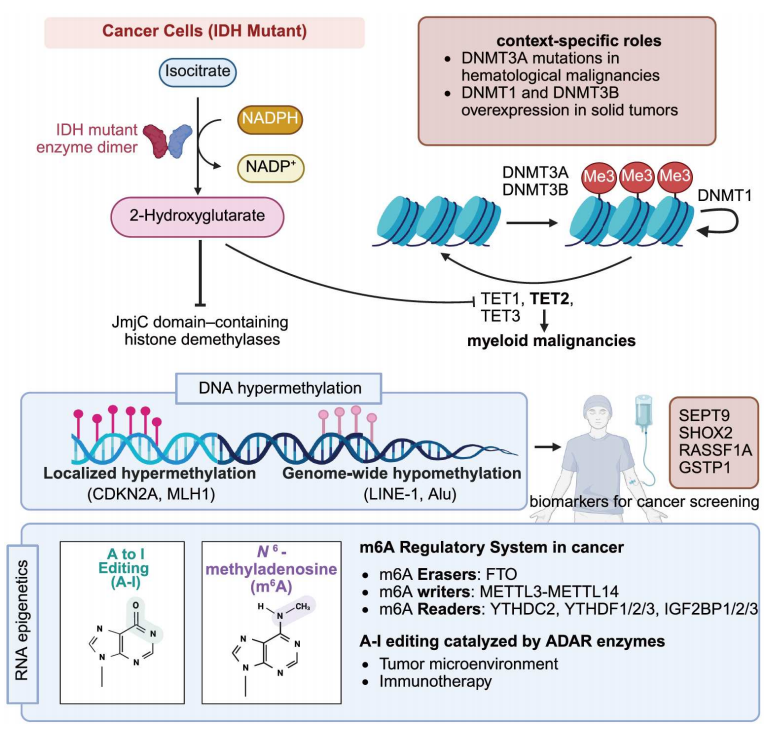
IDH突变—2-HG—表观调控异常是代谢与表观遗传相互作用的代表:部分IDH1/2突变造成2-羟基戊二酸(2-HG)积累,干扰TET和部分组蛋白去甲基化酶,进而改变甲基化及分化状态。
DNMT3A、TET2等调控因子的异常也与血液肿瘤或克隆性造血相关。这些例子说明,DNA修饰变化既可能来自修饰酶本身,也可能来自其代谢环境或上游调控。
6. RNA修饰与肿瘤细胞、免疫细胞状态
RNA修饰及编辑通过改变转录本加工、稳定性和翻译,参与肿瘤进展与治疗反应。
- m6A相关调控:METTL3/METTL14、FTO、ALKBH5及不同识别蛋白,可通过各自靶RNA影响增殖、分化和免疫反应。
- RNA识别蛋白:YTH家族、IGF2BP家族等对修饰信息的识别,决定部分转录本后续命运。
- A-to-I RNA编辑:ADAR相关机制参与内源性RNA识别和免疫调控,其异常与肿瘤免疫环境相联系。
“某种RNA修饰促进或抑制肿瘤”应落实到具体细胞、靶RNA和机制。将RNA修饰组与转录组、蛋白或翻译层面的证据结合,有助于解释功能变化。
七、表观遗传干预:
生物标志物、药物与靶向编辑
本章重点:表观信息的应用包括识别疾病状态、干预调控机制和改变特定位点。三类应用需要的证据不同,成熟程度也不同。
1. 表观生物标志物:从差异信号到应用验证
DNA甲基化具有相对稳定、可检测及一定组织特异性等特点,因此被用于研究疾病筛查、辅助分型、来源判断和病程监测。原文重点讨论组织与体液中的甲基化信息,涉及结直肠癌等多个方向。
- 组织特征识别:利用不同组织的修饰分布,为病理分类或来源推断提供信息。
- 液体活检:分析血液等体液中游离DNA的甲基化,识别疾病相关信号。
- 5hmC研究:利用其组织分布与疾病相关变化,探索不同于5mC的标志物信息。
- 联合标志物:将甲基化与突变、片段特征及其他分子数据结合,评估互补价值。
甲基化检测方法包括化学转换、酶法处理及针对特定标记的富集等。不同检测方法能够区分的修饰、分辨率和样本要求不同。例如,常规亚硫酸氢盐转换通常不能直接区分5mC与5hmC,研究设计必须与目标标记相匹配。
临床研究还需关注真实人群中的低丰度信号、敏感性、特异性及适用场景。病例与对照之间存在差异,是候选标志物的起点;独立队列和前瞻性验证决定其应用价值。
2. 靶向表观调控机制的小分子药物
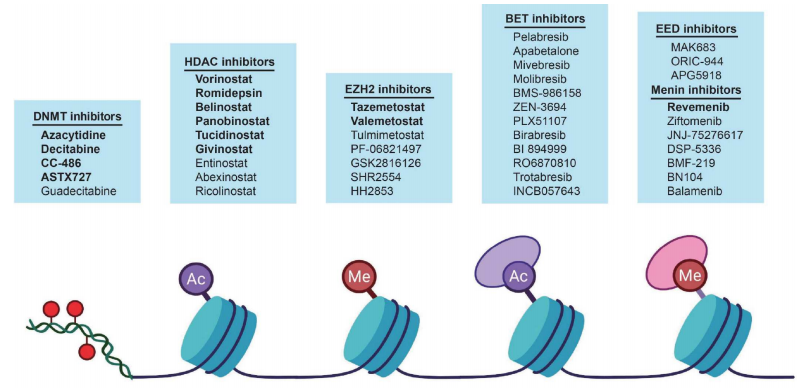
文章按靶点归纳药物类别,并在图中区分论文整理时已获批与处于临床研究阶段的药物。是文章发表时的进展汇总,不代表所有列出药物均已获批或适用于相同疾病。
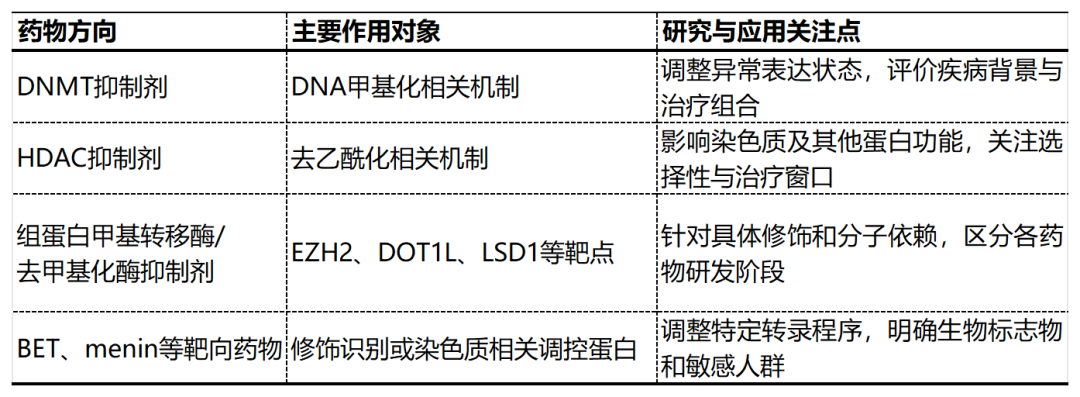
这一部分强调靶点选择与疾病分层。相同调控因子在正常组织中也有功能,因此药物研发不仅要观察修饰改变,还要检验靶向作用、功能获益、剂量范围及耐药机制。
联合治疗研究则需要明确两类干预为何互补:是否增强免疫识别、解除分化阻滞或削弱肿瘤依赖。单纯叠加药物,不等于建立了机制合理的组合。
3. 靶向表观编辑:在指定位置调节基因活动
表观编辑通常由定位模块与效应模块组成。定位模块识别目标DNA区域,效应模块调节局部甲基化、组蛋白修饰或转录活动。
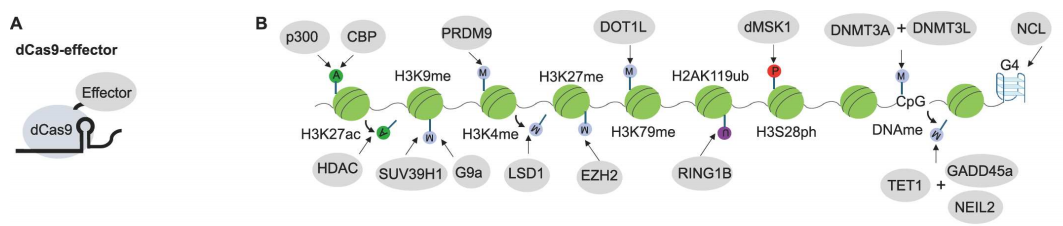
- 定位模块:包括设计型锌指、TALE以及CRISPR相关系统。dCas9失去核酸切割活性,但可在向导RNA引导下定位目标区域。
- 效应模块:可选择DNA甲基化或去甲基化相关酶、组蛋白修饰酶,以及转录激活或抑制模块。
- 募集方式:除直接融合外,SunTag、SAM、Casilio等系统可用于募集效应分子,增强或扩展调控能力。
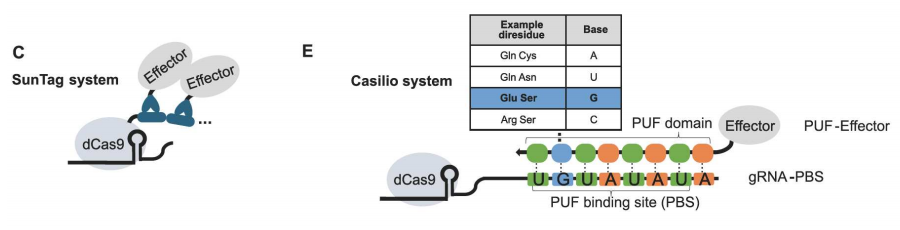
这类工具的价值包括两个方面:研究用途上,可以检验某个调控区域或标记是否影响目标基因与细胞功能;干预研究上,可以探索对特定异常表达程序进行定点调整。
CRISPRoff等策略尝试通过组合抑制模块和DNA甲基化相关模块,在部分模型中建立持续性基因沉默。其结果仍取决于位点、细胞类型和递送方式。不改变目标DNA序列,并不等于调控作用天然精准或能无限期维持。
4. 转化研究的主要问题
原文将递送、选择性、持续性和非目标效应列为表观编辑的重要研究任务:
- 递送到目标细胞:不同器官、细胞类型和递送方式具有不同限制。
- 控制作用范围:效应模块的表达量、定位和修饰扩散可能影响非目标区域。
- 评价维持与撤除:短期有效、长期稳定和可调控是不同要求,需要分别测量。
- 建立功能证据:目标标记改变后,还需观察表达、细胞功能及疾病相关终点。
因此,从关联图谱到干预研究,需要依次完成候选区域定位、因果验证、功能评价与应用场景验证。这一过程也是前述发育、稳态、衰老和肿瘤研究向转化推进的共同路径。
文章最后的展望强调,多层表观调控之间的联系仍有待解析。新型组蛋白修饰、RNA调控和三维结构研究继续扩展研究范围;细胞记忆、适应性及其维持机制,则将基础研究与医学、农业等应用联系起来。
对医学与生命科学研究,值得优先关注三个方向:
1. 从群体差异细化到细胞类型与空间位置。明确变化发生于哪些细胞、处于何种组织环境,并区分细胞比例与细胞内部状态变化。
2. 从静态测量推进到动态过程。通过时间序列、发育阶段或治疗前后配对,观察变化顺序和状态转换。
3. 从关联分析推进到功能验证。结合基因或表观调控扰动,检验候选位点是否参与细胞功能及疾病表型。
技术选择可以按下表对应研究问题。
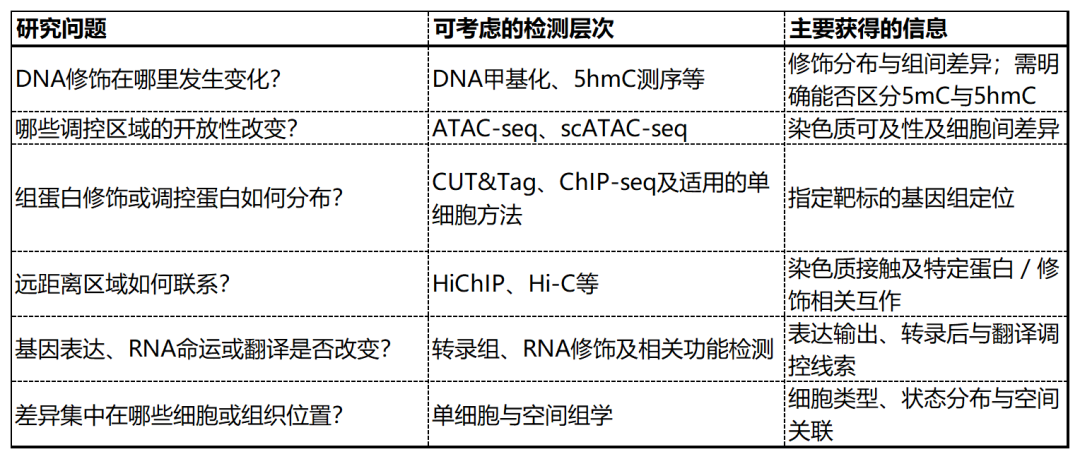
如果您正在设计发育、重编程、组织稳态、衰老或肿瘤表观调控方向的课题,表观多组学联合方案(ATAC-seq/CUT&Tag、甲基化测序、三维基因组、单细胞表观组与空间转录组等)正是表观生物技术团队日常落地的方向,欢迎交流方案设计与数据整合的细节。
https://u.wechat.com/MOojdUxZsxdEHqq5Smfg7W4 (二维码自动识别)