当表观遗传研究走向结构解析:冷冻电镜能回答什么?
从“看见结构”到“读懂机制”
冷冻电镜开启表观遗传蛋白结构研究新窗口
表观遗传调控,究竟是如何发生的?一个组蛋白修饰如何改变酶与核小体的结合?一个染色质重塑复合物如何利用ATP推动核小体移动?DNA甲基化酶又如何识别半甲基化DNA,并在细胞分裂后准确维持甲基化信息?
过去,这些问题往往需要依赖生化实验、突变实验和计算模型进行间接推测。随着冷冻电子显微镜(Cryo-Electron Microscopy,Cryo-EM)快速发展,研究者已经能够直接观察许多核小体、染色质重塑复合物、表观遗传修饰酶以及蛋白-核酸复合物的三维结构,并将“相关性”进一步推进到“结构机制”。
一、为什么表观遗传学越来越需要“结构视角”?
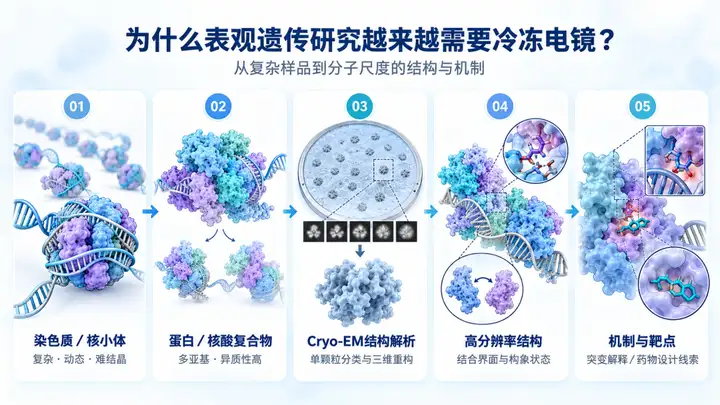
表观遗传调控并不是由单个蛋白独立完成。在真实细胞环境中,DNA被包装在核小体和染色质中,大量调控蛋白需要同时读取DNA序列、组蛋白修饰、组蛋白变体、RNA状态以及染色质空间环境。真正需要回答的,往往不是“这个蛋白长什么样”,而是“它如何识别核小体、RNA或DNA”、“修饰发生后构象如何变化”、“关键突变为什么破坏功能”、“小分子如何锁定某一功能状态”。
传统X射线晶体学在结构生物学中发挥了不可替代的作用,但许多表观遗传蛋白复合物具有分子量大、亚基多、柔性高、构象异质性强和难结晶等特点。Cryo-EM无需传统三维晶体,并可通过大量单颗粒图像进行二维分类、三维分类与重构,因此尤其适合大型蛋白复合物、核小体复合物及蛋白-核酸体系。
二、Cryo-EM正在改变哪些表观遗传研究?
1. 直接观察组蛋白修饰之间的“串扰”
表观遗传学中的经典问题之一,是为什么一个组蛋白位点的修饰会影响另一个位点的修饰。H2BK120泛素化促进H3K79甲基化就是代表性案例。Valencia-Sánchez等利用Cryo-EM解析了DOT1L分别结合H2BK120泛素化核小体和未修饰核小体的结构,显示H2B上的泛素不仅是一个“标签”,还可稳定DOT1L在核小体上的生产性构象,从结构层面解释了修饰串扰的分子基础【1】。
因此,Cryo-EM有助于将“H2Bub升高伴随H3K79me变化”这样的相关性,进一步拆解为具体的蛋白界面、构象变化可供功能验证的关键残基。
2. 看清染色质重塑复合物如何搬动核小体
SWI/SNF家族中的BAF、PBAF,以及INO80、ISWI、CHD等ATP依赖型染色质重塑复合物,是Cryo-EM的重要研究对象。这类复合物通常由多个亚基组成,具有显著的柔性与构象异质性。2022年的PBAF-核小体结构研究显示,SMARCA4 ATPase马达直接抓住核小体DNA的SHL−2位点,同时复合物通过6个组蛋白结合域和4个DNA结合域/模块与核小体形成多价相互作用网络,从而将“染色质定位”与“ATP驱动重塑”连接起来【2】。
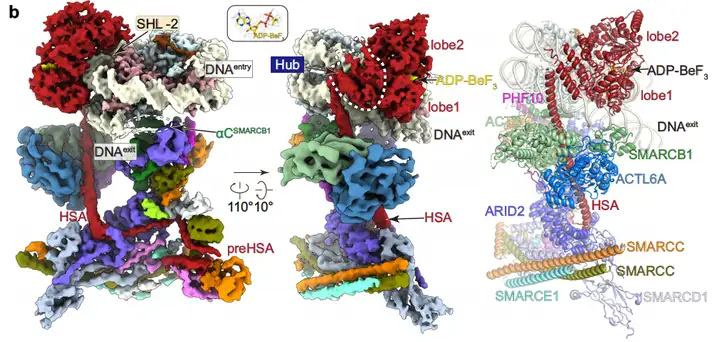
这类结构研究对于肿瘤表观遗传尤其有价值。ARID1A、SMARCA4、SMARCB1、PBRM1等染色质重塑相关基因在多种肿瘤中频繁发生异常。将突变位点映射到高相应复合物结构后,可以进一步区分其主要影响是复合物组装、核小体识别、ATPase活性,还是构象转换,并为潜在药物干预界面的发现提供依据。
3. 从DNA甲基化现象走向DNMT1激活机制
DNA复制后,新生DNA常形成半甲基化状态,DNMT1负责识别这些位点并恢复完整甲基化,从而维持表观遗传信息。Kikuchi等解析了DNMT1与双泛素化组蛋白H3尾肽及半甲基化DNA类似物形成的复合物结构,揭示两种信号共同促使RFTS离开催化核心、CXXC结构域重排并解除自抑制的机制【3】。
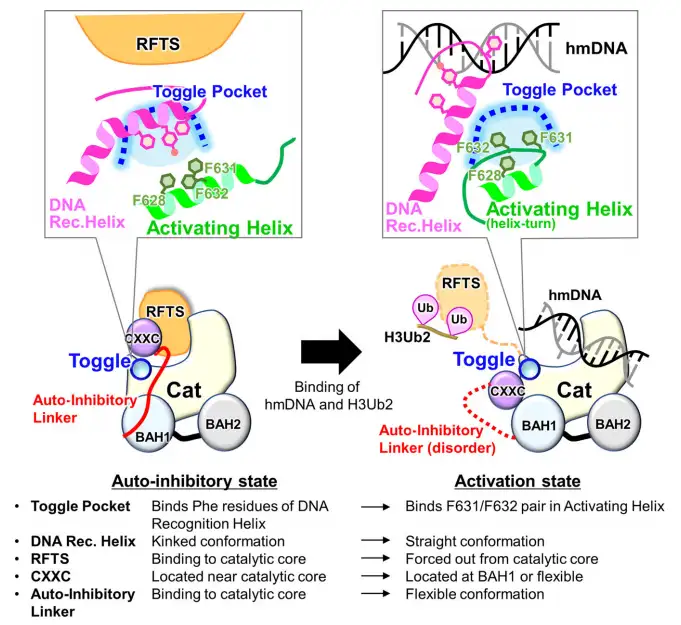
这类研究说明,Cryo-EM的价值并不只是获得一张静态三维图,而是捕获不同功能状态,建立“自抑制-底物识别-构象切换-催化激活”的结构路径。类似思路也可拓展至DNMT、TET、UHRF1、MBD等DNA修饰与识别蛋白。
4. 观察激活型与抑制型组蛋白修饰如何竞争
PRC2负责催化H3K27me3,是Polycomb介导基因沉默的重要核心复合物。2025年《Nat Struct Mol Biol》一篇研究利用Cryo-EM解析了PRC2与含H3K4me3或H3K36me3核小体结合的结构。研究显示,H3K36me3降低H3尾部与PRC2的有效结合,而H3K4me3可占据EED的变构结合位点并与激活因子竞争;二者通过不同途径抑制H3K27me3形成【4】。
这使得“修饰串扰”能够被重新表述为:原子界面 → 构象改变 → 酶活变化 → 染色质状态转换。
5. RNA修饰酶:从RNA底物识别到复合物组装
除经典表观遗传蛋白外,RNA修饰酶也是结构生物学快速扩展的重要方向。以m6A相关的METTL3/METTL14、FTO、ALKBH5及其辅助因子为例,Cryo-EM研究已用于解析多亚基复合物的组装方式及RNA底物结合模型[5]。FTO、ALKBH5等RNA修饰相关蛋白的项目,则应根据样品大小、均一性及研究问题评估适宜的结构方法【5】。对于较大的RNA-蛋白复合物或多组分修饰机器,Cryo-EM可以与生化、质谱、突变和RNA功能实验结合,帮助定位关键界面并解释调控机制。
因此,在表观生物的冷冻电镜结构研究服务中,我们将RNA修饰酶放在组蛋白修饰酶之前作为重点支持对象之一,尤其适合面向RNA修饰机制、疾病突变和潜在药物靶点的研究。
三、为什么表观遗传学越来越需要“结构视角”?
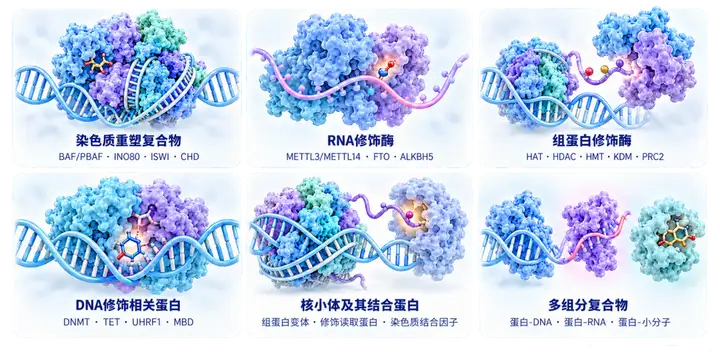
- 染色质重塑复合物:SWI/SNF、BAF、PBAF、INO80、ISWI、CHD等;
- RNA修饰酶:METTL3/METTL14、FTO、ALKBH5及相关RNA修饰复合物;
- 组蛋白修饰酶:HAT、HDAC、HMT、KDM、PRC2等及其多亚基复合物;
- DNA修饰相关蛋白:DNMT、TET、UHRF1、MBD等;
- 核小体及核小体结合蛋白:组蛋白变体、reader蛋白、转录调控因子;
- 蛋白-DNA、蛋白-RNA、蛋白-小分子及其他多组分复合物。
尤其当课题已经获得较完整的生化或功能数据,却仍缺少结构层面的机制解释;或者存在明显的突变效应、构象状态、核酸依赖性结合和药物作用机制问题时,结构研究通常具有更高价值。
四、表观遗传蛋白结构冷冻电镜检测服务
广州表观生物科技有限公司(Epibiotek)面向高校、医院、科研院所和生物医药企业,提供表观遗传与RNA修饰相关蛋白结构冷冻电镜检测与研究服务。我们的目标并不只是完成一次“上机检测”,而是围绕研究问题建立“样品 → 颗粒 → 三维结构 → 分子界面 → 调控机制”的完整研究路径。
1. 从样品开始,而不是从显微镜开始
对于Cryo-EM项目而言,真正决定项目成败的往往是样品本身:复合物是否稳定?是否存在游离亚基?是否容易聚集?核小体或RNA底物的结合比例如何?是否需要配体、ATP类似物或核酸稳定特定状态?是否存在多个构象?这些问题需要在大规模数据采集前完成系统评估。
2. 从一张Micrograph,到三维分子机器
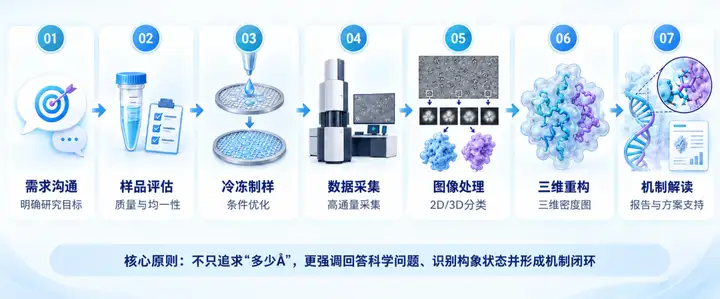
标准项目流程包括:需求沟通、样品评估、冷冻制样、数据采集、图像处理、三维分类/重构、原子模型分析和结构机制解读。对于高度动态的表观遗传复合物,最有价值的结果有时并不是单一“最高分辨率”,而是发现具有生物学意义的多个构象状态,例如开放态/闭合态、底物结合态/非结合态、激活态/抑制态以及不同亚基占有状态。
五、我们希望给您解决的,不只是“结构是多少Å”
结构生物学最终仍然要回到生物学问题。获得三维结构以后,可以进一步围绕关键界面提出:哪些氨基酸值得做点突变?哪些亚基负责核小体、RNA或DNA识别?哪些区域可能承担变构调控?疾病突变位于什么结构位置?是否存在潜在的小分子结合口袋?是否需要进一步结合CUT&Tag、ChIP-seq、ATAC-seq、RNA-seq、RIP/CLIP、蛋白质组学或功能实验进行验证?
更完整的研究闭环:结构发现 → 关键位点 → 功能验证 → 染色质/RNA状态变化 → 生物学机制
六、服务交付内容
- 冷冻电镜原始数据、原始图像及质量控制信息;
- 二维分类、三维分类与三维重构结果;
- 全局/局部分辨率评估与密度图;
- 原子模型构建或结构拟合分析;
- 蛋白-蛋白、蛋白-DNA、蛋白-RNA及蛋白-配体界面分析;
- 关键氨基酸与疾病突变位点结构解释;
- 结构生物学分析报告、论文图表素材及科研汇报支持。
需要特别说明的是,Cryo-EM最终可达到的分辨率高度依赖样品均一性、稳定性、粒子取向、分子柔性和构象异质性等因素。高质量结构项目应以“解决科学问题”为第一目标,而不是在项目开始前简单承诺某一个分辨率数字。
七、应用案例
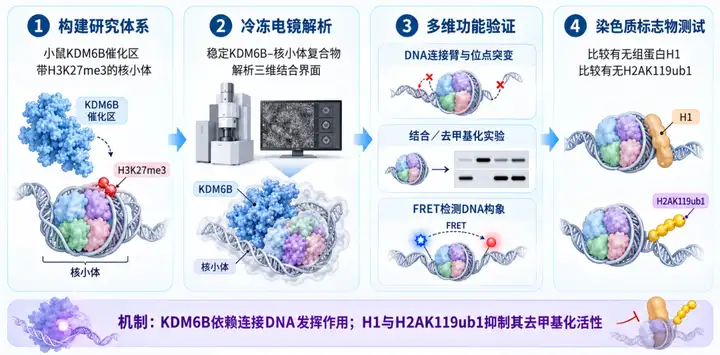
案例1 | KDM6B如何接近核小体并去除H3K27me3(Molecular Cell,2025)【6】
作者利用Cryo-EM解析小鼠KDM6B与核小体的复合物结构,发现KDM6B同时接触核小体缠绕DNA和两侧连接DNA,使催化结构域定位于H3尾部。结合生化实验,研究表明连接组蛋白H1及H2AK119ub1可抑制KDM6B介导的H3K27去甲基化。这一案例展示了结构解析如何解释修饰酶的底物识别及不同染色质标记间的功能联系。
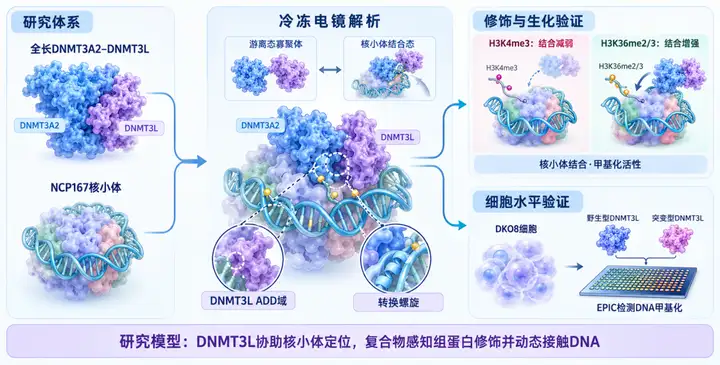
案例2|DNMT3A–3L如何在染色质上建立DNA甲基化(Nature Structural & Molecular Biology,2025)【7】
作者解析全长DNMT3A2–3L结合核小体的冷冻电镜结构,以及无核小体条件下的复合物组装状态。研究显示DNMT3L参与感知组蛋白尾部状态,DNMT3A2–3L在核小体上呈现动态结合,帮助解释从组蛋白信息识别到从头DNA甲基化建立的结构联系。
如果您正在研究染色质重塑复合物、RNA修饰酶、组蛋白修饰酶、DNA修饰相关蛋白、核小体结合蛋白或其他蛋白-核酸复合物,欢迎携带研究问题和样品信息与我们交流。表观生物专业团队可在正式实验前协助评估Cryo-EM可行性、样品优化路径及后续结构机制研究方案。
参考文献
1. Valencia-Sánchez MI, De Ioannes P, Wang M, et al. Structural Basis of Dot1L Stimulation by Histone H2B Lysine 120 Ubiquitination. Mol Cell. 2019;74(5):1010-1019.e6.
2. Wang L, Yu J, Yu Z, et al. Structure of nucleosome-bound human PBAF complex. Nat Commun. 2022;13(1):7644. Published 2022 Dec 10.
3. Kikuchi A, Onoda H, Yamaguchi K, et al. Structural basis for activation of DNMT1. Nat Commun. 2022;13(1):7130. Published 2022 Nov 21.
4. Cookis T, Lydecker A, Sauer P, Kasinath V, Nogales E. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 2025;32(2):393-404.
5. Su S, Li S, Deng T, et al. Cryo-EM structures of human m6A writer complexes. Cell Res. 2022;32(11):982-994.
6. Lin CC, Zhao Y, Foley CA, et al. Structural mechanism of H3K27 demethylation and crosstalk with heterochromatin markers. Mol Cell. 2025;85(15):2869-2884.e6.
7. Yan Y, Zhou XE, Thomas SL, et al. Mechanisms of DNMT3A-3L-mediated de novo DNA methylation on chromatin. Nat Struct Mol Biol. 2026;33(1):171-183.
- - - 推荐阅读 - - -
颠覆认知,一碗中药里究竟藏着怎样的自组装纳米结构和成分?
中药自组装纳米颗粒一站式服务
2026-09-17

Epi™ Gapmer ASO设计及合成服务
表观生物提供Gapmer ASO设计及合成服务,通过创新的化学修饰技术与精准的序列设计,实现对目标RNA的高效、特异性降解,为您的功能缺失性研究提供体内外双重解决方案,同时也是类器官功能研究的利器。
2025-11-13

肿瘤类器官构建及多组学测序服务
类器官(Tumor organoids)是一种体外培养的三维细胞聚集体,能够模拟实际肿瘤的微环境、结构和功能。它被Science评为2013年度十大技术;被Nature Method评为2017年度方法,喻为肿瘤患者的“试药替身”;2021年,科技部把类器官列为 “十四五“国家重点研发计划的6个重点专项之一。如果说基因检测是肿瘤精准治疗1.0时代,那类器官体外药敏分析可以称之为肿瘤精准治疗2.0时代。
2026-01-16